铁死亡:细胞为什么会"生锈"而死
铁死亡是一种由铁依赖的脂质过氧化驱动的程序性细胞死亡。理解它的三条防线——铁代谢、谷胱甘肽过氧化物酶 GPX4、以及线粒体与过氧化物酶体的分裂调度——就能理解为什么肿瘤细胞对它格外敏感。
本节你将能
- 说清铁死亡与凋亡、坏死性凋亡在机制上的根本差别
- 画出铁死亡的三条防线:铁代谢、GPX4 抗氧化、细胞器分裂调度
- 解释为什么 MFF Ser155 磷酸化被称为铁死亡的"执行开关"
直觉模型:细胞版的生锈
铁生锈是铁原子被氧气氧化,生成疏松的氧化物。细胞里有一件几乎一样的事:细胞膜上含多不饱和脂肪酸的磷脂(polyunsaturated fatty acid-containing phospholipid,PUFA-PL)被氧化,链反应一旦起头就会顺着膜蔓延,把膜结构整片破坏掉。区别只在于,细胞里的氧化剂不是空气,而是游离的二价铁离子(Fe2+)——它通过芬顿反应把过氧化氢拆成活性极强的羟自由基。
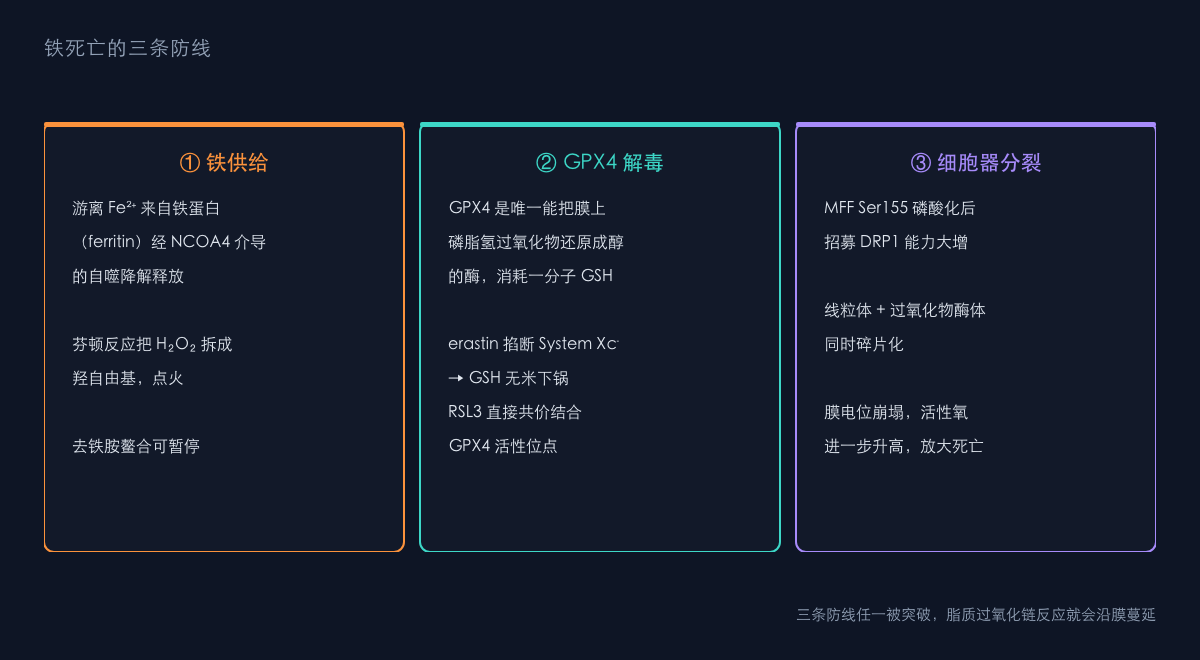
图1:铁死亡的三条防线——铁供给、GPX4 解毒、细胞器分裂调度
凋亡是细胞主动拆掉自己,细胞膜保持完整,邻居几乎不受影响;坏死是外力撕裂,内容物外泄引发炎症。铁死亡介于两者之间:它有自己的程序,但执行方式是"膜被氧化烂掉",所以形态上更接近坏死。这也是为什么它在肿瘤治疗上有价值——很多耐药肿瘤细胞的凋亡通路已经废了,但它们的膜上照样有 PUFA-PL,照样可以被点着。
核心要点
第一,铁是燃料。细胞内的游离铁主要来自铁蛋白(ferritin)的自噬降解。铁蛋白被 NCOA4 介导送往溶酶体分解后释放 Fe2+,细胞内不稳定铁池随之升高。用去铁胺鳌合铁,或者抑制铁蛋白自噬,都能把铁死亡按下暂停键。
第二,GPX4 是灭火器。GPX4 是目前已知唯一能把膜上磷脂氢过氧化物还原成无害醇类的酶,代价是消耗一分子还原型谷胱甘肽(GSH)。所以铁死亡的经典诱导剂分两类:erastin 类通过抑制 System Xc⁻ 转运体掐断胱氨酸供应,让 GSH 无米下锅;RSL3 类直接共价结合 GPX4 的活性位点硒代半胱氨酸,把灭火器本身砸了。
第三,细胞器分裂是放大器。这一点在 2026 年被浙江大学团队写清楚了。他们用高精度磷酸化组学比较凋亡、坏死性凋亡和铁死亡三种死亡方式,在 7587 个磷酸化位点里挑出只在铁死亡中被大幅诱导的一个:MFF 蛋白第 155 位丝氨酸。
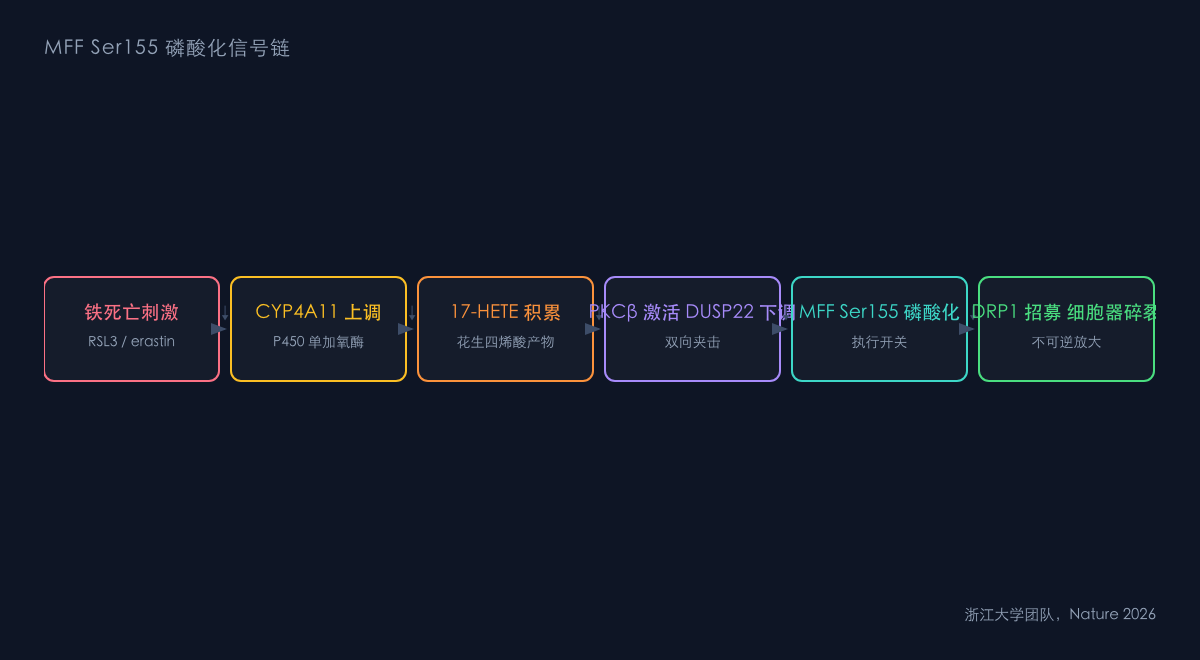
图2:从 CYP4A11 到细胞器碎片化的信号链
链条是这样跑的:铁死亡刺激让细胞色素 P450 单加氧酶 CYP4A11 表达上调,催化生成并积累花生四烯酸代谢产物 17-HETE;17-HETE 与刺激信号共同作用,一边激活蛋白激酶 C-β(PKCβ)并促使它转移到膜上,一边压低双特异性磷酸酶 DUSP22 的表达。两头夹击的结果,是 MFF 的 Ser155 被磷酸化。磷酸化的 MFF 招募 DRP1 的能力大幅增强,于是线粒体和过氧化物酶体同时被切碎。
碎裂这件事本身会放大死亡信号:线粒体和过氧化物酶体都是活性氧的产地,形态被打散后膜电位崩塌、代谢物泄漏,氧化压力进一步推高。在多个癌细胞系里敲低 MFF,能同时挡住 RSL3、erastin 和 GPX4 缺失引发的铁死亡,GSH 氧化还原平衡也保住了——但对凋亡和坏死性凋亡毫无影响。这说明 MFF Ser155 是铁死亡专有的执行开关,不是所有细胞死亡共用的零件。
怎么看到它发生
传统方法靠测脂质过氧化产物(如 MDA、BODIPY-C11 探针氧化后的荧光偏移),时间分辨率差。浙大团队另做了一个叫 MFF-SPARK 的相分离传感器:MFF Ser155 一旦被磷酸化,传感器分子就会在细胞内形成可见的凝聚亮点,20 分钟内能读出信号。这类工具把"细胞正在走向铁死亡"从一个终点读数变成了可以实时观察的过程量。
三种死亡方式对照
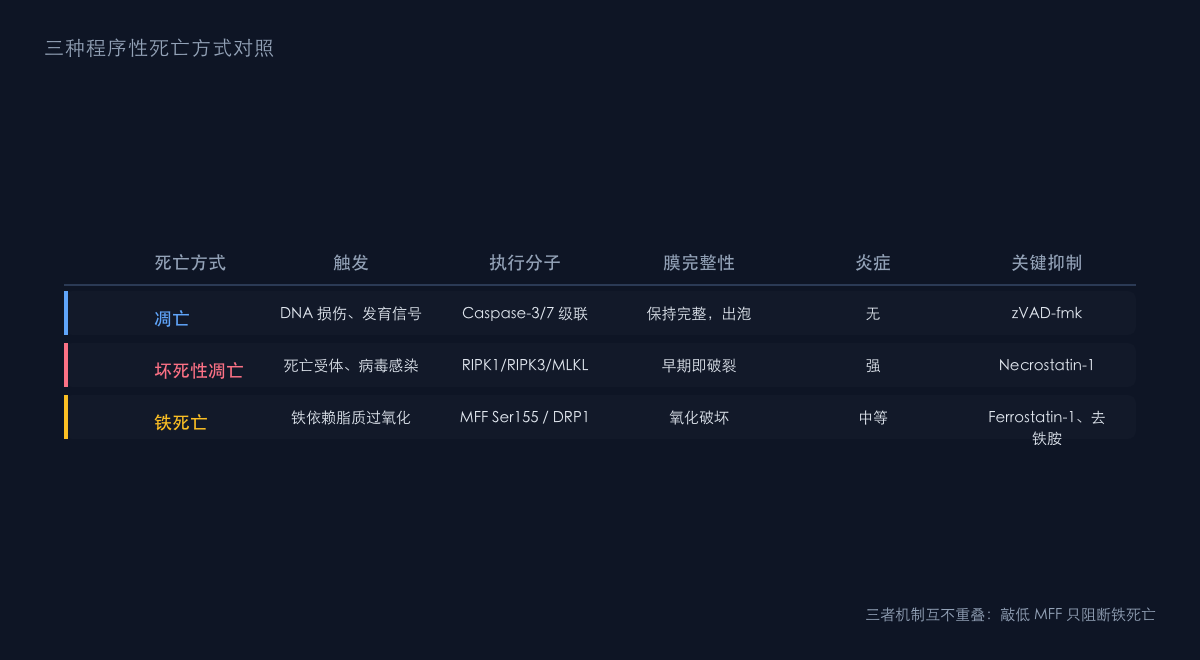
图3:凋亡、坏死性凋亡、铁死亡的形态与机制对照
为什么值得学
铁死亡的研究在十年里从"一种奇怪的死亡现象"变成了肿瘤和缺血再灌注损伤两个方向的候选靶点。它的特殊之处在于:触发点不在基因调控层,而在细胞膜的化学组成上。这意味着药物开发工具箱也不一样——不是找激酶抑制剂,而是找能改变膜脂组成、能调动铁池、或者能干预细胞器分裂的分子。